Когда начинается копирование наследственного материала, большинство не задумываются, что этот процесс состоит из нескольких последовательных стадий, каждая из которых выполняет свою функцию. В этом тексте мы разберем, как именно происходит репликация, и выделим ключевые моменты, важные для понимания молекулярных механизмов.
Зачастую возникновение новой цепи связывают с началом, так называемым, происхождением репликационной вилки. Здесь, в точке разрыва цепи, ферменты активируют процесс, и ДНК начинает раскручиваться. Затем, с помощью специального фермента ДНК-полимеразы, новая цепь создается по образцу матрицы, что обеспечивает точность копирования.
Следующий этап включает в себя синтез слияния, где ферменты работают группами, создавая новые нитки последовательно и синхронно. Этот многоступенчатый механизм требует не только точности, но и высокой скорости, чтобы вся молекула ДНК была скопирована за разумное время, минимизируя ошибки и повреждения.
Механизм начала и подготовки к репликации ДНК
Перед стартом репликации происходит сбор белковых комплексов, которые распознают начальные участки ДНК – так называемые происхождения репликации. Эти участки часто имеют специфические последовательности нуклеотидов, привлекающие стартовые белки.
Первый шаг заключается в том, что белковые комплексы, такие как белки-инициаторы, связываются с этих участках и создают условия для распупыряния двойной спирали. Этот процесс помогает отделить две цепи ДНК и обеспечить доступ к мембранной зоне, где будет происходить репликация.
Далее, происходит формирование репликационных вилок – локальных пунктов разреза двойной спирали. В этих точках белки-ферменты, такие как ДНК-полимеразы и белки-шейники, присоединяются к односторонней цепи и начинают синтез новой нуклеотидной последовательности.
Особое внимание уделяется активации геликаз, которые распутывают двойную спираль, и белков-стабилизаторов, препятствующих повторному спирализованию цепей. Это обеспечивает беспрепятственный доступ к участкам, где начнется синтез новых цепей.
На следующем этапе происходит точечное нагружение: запускается инициаторная рибонуклеиновая кислота (РИБА), которая позиционируется в начальной точке репликации. Этот небольшой рибонуклеотид запускает работу ДНК-полимераз и запускает процесс синтеза.
Используя эти механизмы, клетки создают подготовительную базу для синтеза новых цепей, обеспечивая высокую точность и эффективность всего процесса репликации.
Как распознаются и формируются стартовые точки репликации
Распознавание стартовых точек репликации начинается с специфичных последовательностей ДНК, богатых А-Т парами, которые легче разрыхляются. Эти участки называются Ori (origin of replication) и имеют характерные последовательности, узнаваемые особенными белками. В частности, белки-инициаторы связываются с этими регионами, что запускает процесс разрыхления двойной спирали.
Для активизации процесса требуются ролевая роль занимают белки-инкубаторы, такие как ORC (origin recognition complex), которые навязывают последовательности и создают платформу для присоединения дополнительных факторов. В совокупности эти белки обеспечивают стабилизацию расплетенного участка и подготавливают ДНК к дальнейшей репликации.
Формирование стартовых точек зависит от уникальных комбинаций последовательностей и присоединения регуляторных белков. Они активируют локальное разрыхление и создают способ для привлечения ферментов репликационной машины, таких как ДНК-полимераза и связанные с ней комплексные белки.
Процесс одновременного распознавания и подготовки стартовых точек включает включение следующих этапов:
- Выбор потенциальных стартовых участков на основе последовательностных характеристик;
- Связывание белков-распознавачей и формирование комплекса инициации;
- Разрыхление ДНК с помощью белков-расцепителей, что позволяет ферментам получить доступ к нитям;
- Активизация репликационного комплекса и начало синтеза новых цепей.
Этот механизм гарантирует точное и своевременное начало репликации в каждом из участков, предотвращая ошибки и обеспечивая синхронный рост генетического материала.
Роль ориджин-зонисов и их характеристика в разных организмах
Рекомендуется выбрать участки ДНК с высокой специфичностью и стабильностью для начала репликации, что достигается за счет наличия ориджин-зонисов.
В клетках бактерий такие зоны обычно короткие, с богатством А-Т пар, что облегчает расплетание двойной спирали и снижает энергоемкость активации репликации. Эти ориджин-зонисы содержат специфичные последовательности, узнаваемые с помощью белков-инициаторов, таких как DnaA в Escherichia coli.
У эукариот ориджин-зонисы длиннее и менее последовательностно определены, что требует наличия множества точек начала репликации для обеспечения быстрого и синхронного копирования всей геномной информации. Такие зоны характеризуются насыщенностью определенных ферментов и особенностями хроматиновой структуры.
Характеристика ориджин-зонисов в различных организмах показывает важность наличия А-Т богатых участков, которые способствуют легкому расплетанию ДНК и доступу к стартовым белкам.
Молекулы инициаторов в бактериях и эукариотах обладают разной структурой и регуляторными особенностями, что отражается на локализации и количестве ориджин-зонисов. В бактериях один или несколько участков позволяют контролировать начало репликации, а у эукариот – множество точек начала по всему геному, что обеспечивает эффективность копирования.
Гетерогенность ориджин-зонисов в разных видах наблюдается также в плотности их расположения и числе. В бактериях часто присутствует один основной участок, тогда как у многоклеточных организмов – многочисленные, что помогает избежать задержек в репликации и предотвращает ошибки.
Изучение отличий в характеристиках ориджин-зонисов помогает понять механизмы регуляции начала репликации и разрабатывать методы управления этим процессом в биотехнологии и медицине.
Процесс размножения и сборки репликационного комплекса
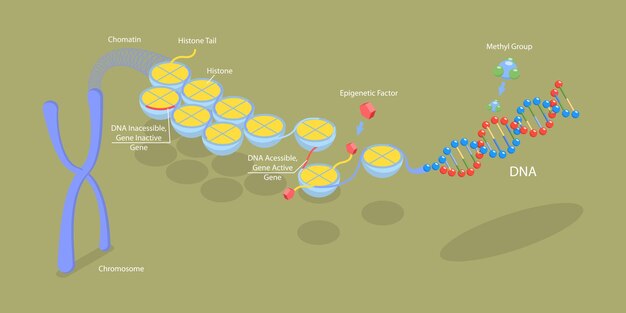
Начинайте с активации происхождения репликации, которая привлекает ключевые белки, такие как инициаторные белки и DnaA. Эти белки распознают контрольные участки и вызывают локальную разрывность ДНК, что создает стартовые точки для сборки комплекса.
Затем протекает формирование репликационной вилки, где репликационная машина укрепляется. Это достигается путем присоединения белков-процессоров, таких как DnaB и DnaC, обеспечивающих локальную размотку двойной спирали и превращение ее в одноцепочечные шаблоны.
Значительный этап включает ассоциацию праймазных ферментов, таких как DNA primase, которые синтезируют короткие первичные РНК-очереди, служащие заготовками для последующего синтеза ДНК. Эти цепи связываются с большими белковыми комплексами, образуя стабильную платформу для продолжения репликации.
Далее происходит последовательное присоединение ДНК-полимеразы I и III, обеспечивающих синтез новой цепи. Полимераза III осуществляет быстрое и точное удвоение цепи, двигаясь в направлении 5’>3′, добавляя нуклеотиды к растущей цепи и обеспечивая близкую к 100% точность копирования.
Завершающим этапом служит объединение разорванных участков, где ферменты сшивают фрагменты Оказаки, создающие непрерывную цепь. Специальные белки фиксируют собранную цепь, предотвращая ее расплетение и обеспечивая стабильность репликационных участков.
После завершения сборки репликационного комплекса осуществляется его демонтирование, освобождая место для следующего раунда репликации, что позволяет процессу происходить последовательно и синхронно на обеих цепях ДНК.
Влияние факторов внешней среды на старт репликации
Факторы окружающей среды, такие как уровень кислорода, наличие радиации и концентрация вредных веществ, напрямую воздействуют на механизм запуска репликации ДНК. Высокое содержание окислителей вызывает повреждение ДНК, что может блокировать начало репликации или вызывать ее замедление. Например, избыточное ультрафиолетовое излучение способствует формированию тетрагидропиримидиновых фотополов, которые мешают начальной стадии копирования ДНК.
Дополнительно, изменение уровня ионов металлов, таких как цинк и магний, влияет на активность ключевых ферментов репликационного комплекса. Когда концентрация этих металлов выходит за пределы нормы, активность ферментов, например, ДНК-полимеразы, ослабляется, что подавляет запуск репликации.
Другой важный фактор – присутствие токсинов и загрязнителей воздуха, таких как полициклические ароматические углеводороды, которые связываются с компонентами репликационного комплекса или повреждают репликасные участки, препятствуя их распознаванию. Наличие этих веществ может замедлить или полностью блокировать переход от комплекса инициаторов к активной фазе копирования.
| Фактор | Влияние на запуск репликации | Механизм воздействия |
|---|---|---|
| Уровень кислорода | Повышение или снижение | Окислительный стресс повреждает ДНК или активирует сигнальные пути, регулирующие репликацию |
| Ультрафиолетовое излучение | Блокировка начала репликации | Образование фотополов, мешающих распознаванию репликаторных сайтов |
| Металлы (Цинк, Магний) | Изменение активности ферментов | Дефицит или избыток влияет на структуру ферментных активных центров |
| Загрязнители воздуха | Подавление или задержка | Повреждение ДНК и взаимодействие с белками репликационного комплекса |
—
Sponsor
Основные этапы репликации ДНК и их технологические аспекты
Инициация начинается с распознавания стартовых точек репликации – орисов. Используйте высокоселективные методы для определения этих участков, например, нуклеотидные метки или секвенирование, чтобы обеспечить точность определения начальной позиции. В лабораторных условиях важно обеспечить оптимальные условия для формирования репликационных пузырей, что влияет на скорость и качество всей реакции.
Развитие репликационных вилок предполагает активное расплетание двойной спирали. Для этого применяют ферменты – праймазу и топоизомеразу. В технологической практике важно контролировать активность этих ферментов, чтобы предотвратить опасные повреждения структуры ДНК и обеспечить равномерное развитие вилок без остановки процесса.
Синтез новой цепи – критический этап, в ходе которого ДНК-полимераза добавляет нуклеотиды. Современные системы используют ферменты с высокой точностью и скоростью, а также наличие вспомогательных факторов, таких как праймазы и протеинов-закрепителей. В технологических протоколах рекомендуется контролировать концентрацию необходимых веществ и условия реакции, чтобы снизить ошибки вставки или пропуска нуклеотидов.
Длина и темпы синтеза устанавливаются за счет взаимодействия множества факторов, включая наличие праймаз и доступность исходных нуклеотидов. Почему это важно? Чтобы повысить эффективность, используют специальные буферы, регулирующие pH и ионную силу, что способствует стабильной работе ферментов и равномерному слою нуклеотидов.
Ликвидация okazaki-фрагментов и их объединение – завершающие шаги на цепочке. Используйте ферменты лигазы для соединения фрагментов, а также системы очистки и проверки, такие как электрофорез и секвенирование. В технологии стоит уделить особое внимание проведению этих операций, чтобы избежать ошибок сборки новых цепей, что может привести к мутациям или неполноценной репликации.
Контроль качества осуществляется на каждом из этапов: от проверки целостности исходного материала до анализа финальных продуктов с помощью методов молекулярной биологии. Регулярное тестирование помогает выявить отклонения и скорректировать параметры перед следующей партией, обеспечивая стандартизацию и надежность процессов.
Расхождение двойной спирали и формирование репликационной вилки
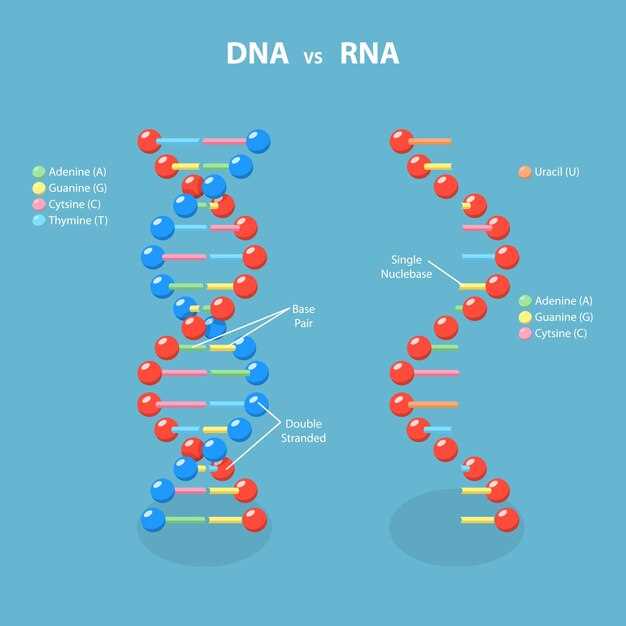
При начале репликации ДНК ферменты расплетают две цепи двойной спирали, создавая участки, где молекула разделяется. Процесс начинается с локализации точки начала репликации, после чего ДНК-вилку формируют благодаря деятельности ДНК-гираз, которая расплетает цепи и создает временные разрывы, позволяющие доступ к обеим цепям.
Расхождение двойной спирали происходит по спиральной структуре, что требует определенной энергии и ферментативных усилий. В ходе этого процесса образуются так называемые ‘репликационные вилки’ – зоны активного синтеза новых цепей. Эти вилки протягиваются в обе стороны от точки начала, расширяясь по мере расплетания спирали.
На каждом конце вилки располагаются две важные области:
- Локус формирования репликационных пузырьков: здесь происходит активное расхождение цепей и присоединение новых нуклеотидов.
- Образование репликационных ложбинок: зоны, где происходит расплетание и синтез новой цепи, сопровождающееся движением вилки.
Расхождение начинается с активизации ДНК- Helicase, которая разрушает водородные связи между комплементарными основаниями. Этот фермент ‘рассекает’ двойную спираль на определенной области, открывая основаполосы для дальнейшего расплетения.
Далее, чтобы стабилизировать разошедшиеся цепи и предотвратить их повторное сплетение, присоединяются белки-одиночники (Single-Strand Binding Proteins). Они удерживают цепи в расплавленном состоянии, создавая условия для активной работы ДНК-полимеразы и других ферментов.
Образование репликационной вилки завершает начальную стадию репликации. От этого момента начинается синтез новых цепей, который продолжается вдоль расхождения цепей, расширяя вилку и увеличивая объем синтезируемых новых молекул. Этот механизм обеспечивает быстрый и точный дупликационный процесс, подготовляя клетку к новым этапам деления.
Синтез новой цепи: роль ферментов и механизм полимеразы
ДНК-полимераза работает строго в 5′ к 3′ направлении, добавляя нуклеотиды к 3′-концу растущей цепи. В ходе этого механизма фермент использует энергию гидролиза высвобождающихся при образовании связей между нуклеотидами – именно это позволяет ему преодолевать энергетический барьер для синтеза новых фрагментов.
Роль вспомогательных ферментов не менее важна. Например, топоизомераза снижает напряжение в ДНК, которое возникает при расплетании двойной спирали, улучшая доступ к матрице. Ликаза устраняет оверхвили, связанные с началом репликации, обеспечивая плавность процесса.
Особое значение имеет праймазная активность ДНК-рагаза, которая удаляет RNA-праймеры, необходимые для запуска синтеза, и предоставляет место для замыкания последних фрагментов цепи. После этого ДНК-лиagrama активно занимается ‘залатыванием’ разрывов, создаваемых при репликации.
Механизм работы полимеразы предусматривает ‘спаривание’ нуклеотидов с комплементарными основаниями матрицы: А с Т, Г с Ц. Благодаря этому качество копирования повышается, а ошибки минимизируются. В случае ошибок фермент способен обходить неправильно спаренные нуклеотиды или исправлять их при помощи встроенной функции эксцизии.
Разработка и использование специализированных полимераз с высокой точностью делают возможным успешное завершение репликации. Совмещение работы всех составляющих этого процесса позволяет считать синтез цепи ДНК с помощью ферментов одним из самых организованных и слаженных биологических механизмов.
Обработка ошибок и коррекция нуклеотидных последовательностей
В процессе репликации ДНК полимераза использует активный механизм исправления ошибок. Прежде всего, она обладает 3′-5′ экзонуклеазной активностью, что позволяет ей обнаруживать и удалять неправильно спаренные или вставленные нуклеотиды. Такой механизм обеспечивает высокую точность копирования, снижая вероятность появления мутаций.
Когда полимераза выявляет ошибку, она немедленно останавливается, удаляет неправильно вставленный нуклеотид и повторно вставляет правильный. Этот процесс помогает сохранить последовательность. В случае, если ошибка пропускается на первом этапе, работают системы коррекции, встроенные в репликационный комплекс. Они используют активность 3′-5′ экзонуклеазы для устранения ошибок уже после синтеза, что повышает точность финального продукта.
Обработка ошибок включает также пострепликационную коррекцию, когда ферменты исправляют остаточные неправильные связи после завершения основной репликации. Этот этап критичен для минимизации мутаций, особенно в клетках с высокой активностью деления.
| Механизм исправления ошибок | Описание |
|---|---|
| Активность 3′-5′ экзонуклеазы | Обнаружение и удаление неправильно вставленных нуклеотидов во время репликации |
| Пострепликационная коррекция | Исправление ошибок после завершения синтеза с помощью специальных ферментов |
| Механизм репарации | Дополнительные пути устранения мутаций, связанные с восстановлением поврежденных участков ДНК |
Обработка ошибок при репликации достигается за счет сочетания автоматической проверки и активного удаления неправильно сопряженных нуклеотидов. Постоянный контроль и коррекция помогают сохранять целостность генетической информации и предотвращать опасные мутации.
Завершение репликации и разделение дочерних молекул
После синтеза новой цепи ДНК полимеразой фермент завершает миграцию по матрице, оставляя за собой ферментативную активность, которая избавляет от останков неисползованных нуклеотидов и формирует окончательный вид молекул. В этот момент активируется специальная ферментная система, которая ориентирует разделение двух идентичных дочерних молекул, обеспечивая их последующую самостоятельную функцию.
Ключевым шагом для разделения является уничтожение связок гликагидридных, соединяющих две цепи ДНК, – этот процесс осуществляет гуказа и топоизомераза. После разрушения связей молекулы мягко разделяются благодаря действиям ферментов, напоминающих молярные “разделители”, которые не допускают образования кельмов. Разделение сопровождается усиленной проверкой целостности каждой молекулы: если обнаруживаются повреждения или неполные участки, системы репликации устраняют неисправности, используя специализированные механизмы исправления.
Свободные 3′-концы каждой дочерней цепи соединяются с новыми нуклеотидами, создавая абсолютную независимость молекул друг от друга. Этот процесс автоматичен и происходит в рамках комплекса белков, обеспечивающих стабильное и точное окончание репликации. В целом, именно в этот момент происходит формирование двух полноценных ДНК-молекул, каждая из которых содержит одну оригинальную и одну синтезированную цепь, что и является завершением репликационного цикла.


