Обычно закладываются в ранней эмбриональной стадии, предшественники половых клеток являются ключевым звеном в процессе формирования репродуктивных систем. их развитие отличается особой однородностью и одновременно высокой сложностью, что обеспечивает точное наследование генетической информации.
Первичные клеточные линии начинают свой путь в стенке желточного мешка, где они проходят серию дифференцировочных стадий, направленных на обеспечение их дальнейшей специализации. в процессе их миграции к полуразвивающимся гонадам формируются уникальные молекулярные маркеры, подтверждающие их происхождение и функциональные перспективы.
Значение предшественников половых клеток заключается не только в их роли как генетического носителя, но и в тех особенностях развития, которые позволяют сохранять генетическую стабильность на протяжении поколений. исследования выявляют конкретные сигнальные пути, регулирующие их дифференцировку, что открывает новые возможности для понимания репродуктивных патологий и методов их коррекции.
Происхождение и начальные стадии формирования предшественников половых клеток
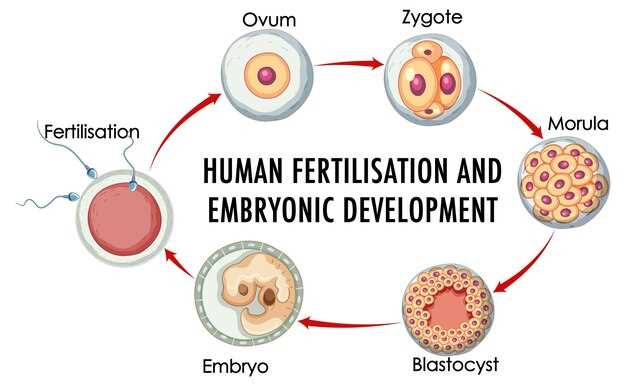
Гаметоциты начинаются с появления прегенеральных клеток – первичных половых клеток, которые формируются в ранних стадиях эмбрионального развития. Их происхождение связывают с линиями клеток на стадии гаструлы, где клетки мигрируют в определённые области зародыша и дифференцируются под воздействием сигнальных молекул.
На этапе газрулы в эмбрионе зарождаются прегенеральные клетки, которые по мере развития формируют пролиферирующие популяции. Эти клетки проходят через несколько делений, что приводит к увеличению их численности и подготовке к последующему дифференцированию.
Переход к стадии первичных половых клеток происходит в определённой зоне зародыша – половых губках, которые формируются вблизи наботовой кости. Там прегенеральные клетки подвергаются репликации, приобретают признаки малых гамет, и начинают миграцию к гономам.
Миграция прегенеральных клеток осуществляется по эмбриональному пространству с помощью актиновых нитей и моторных белков, что позволяет им достигнуть будущих яичников и семенников. В процессе этого движения клетки приобретают характерные морфологические особенности, которые отличают их от других клеток организма.
После достижения нужных участков прегенеральные клетки закрепляются в определённых зонах и переходят на следующую стадию развития – формирование oogonia у девочек и сперматогонии у мальчиков. Эти стадии определяют дальнейшее деление и дифференцировку половых клеток, ведущие к формированию зрелых гамет.
Эмбриональные источники и пути миграции primordial germ cells (ПГК)
Первые primordial germ cells формируются в гипобластной области у зародыша на ранних стадиях эмбрионального развития. Они возникают из эктодермальных клеток, расположенных на задней стенке лагеруна, вблизи области будущей анальной области. В течение первых дней после появления этих клеток, ПГК активно делятся и мигрируют в сторону половых зачатков.
Основным путём миграции ПГК является транспорт через мезодерму и интермезодерминальные пространства. Вначале клетки двигаются к средней линии эмбриона, следуя за сигнальными градиентами, которые определяют направление их перемещения. Важными путями являются межклеточные пространства вдоль дорсальных аорт и мочеполовых зачатков.
Миграция включает активную пролиферацию, движение и ориентацию по градиентам хемокинов, таких как CXCL12. Эти молекулы привлекают ПГК к будущим гонадам, обеспечивая их точное расположение. В процессе перемещения клетки используют цитоскелетные механизмы, такие как актиновая сеть, и перемещаются с помощью псевдоподий и моторных белков.
Далее, в конце миграционного пути, клетки задерживаются в половых зачатках, где они дифференцируются в primordial germ cells, приобретая признаки будущих половых клеток. В этом месте клетки проходят дальнейшее развитие, делясь и образуя запасы, необходимые для гаметогенеза.
Понимание путей миграции и источников эмбриональных ПГК помогает понять механизмы ранней половой дифференцировки и формирования половых линий, а также открывает возможности для изучения нарушений репродуктивной системы и методов их коррекции.
Механизмы размножения и миграции в ранней эмбриональной стадии
Размножение в ранних этапах эмбриогенеза происходит за счет митоза, который обеспечивает быстрый рост и увеличение числа клеток без изменения генетического материала. Этот процесс позволяет эмбриону сохранять целостность и гетерогенность клеточных линий, что играет важную роль в формировании основных структур будущего организма.
Миграция клеток – ключевой механизм, позволяющий им достигать определённых локализаций для дальнейшего дифференцирования. Особенно важной является миграция половых предшественников – гондальных клеток, которые вначале возникают вне эмбриона, например, в энтодерме желточного мешка, а затем перемещаются в клетки половой пластинки, расположенной вблизи трохле?ды.
Этот процесс контролируется сложной сетью сигналов и факторов роста, таких как SDF-1 и CXCR4. Они создают градиенты, привлекающие клетки к целевым зонам. Важной особенностью является способность клеток сохранять пластичность и способность к движению, что обеспечивает их успешную миграцию без потери функциональных характеристик.
Миграционная активность регулируется цитоскелетными изменениями, включающими перестройку микротрубочек и актиновых волокон. Эти механизмы позволяют клеткам изменять форму и проталкивать себя через межклеточные пространства, избегая препятствий и достигая нужных участков.
Размножение и миграция взаимосвязаны: быстрое деление увеличивает численность клеток, а затем они активно перемещаются, чтобы сформировать предварительные гонады или другие ключевые структуры эмбриона. Этот баланс следит за тем, чтобы развитие происходило по определенному сценарию, без задержек и повреждений.
Факторы, регулирующие положение и дифференцировку ПГК
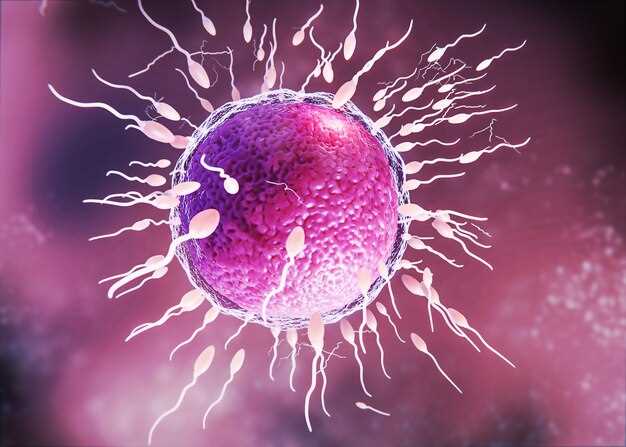
Расположение и развитие половых ганных клеток (ПГК) зависит от взаимодействия нескольких ключевых факторов, которые управляют их миграцией, расположением и специализацией. Гормональные сигналы, в частности гонадотропины, играют важную роль в поддержке роста и дифференцировки ПГК, особенно на этапе активной репликации и мейоза.
Молекулярные сигналы, такие как фактор роста и пептиды, регулируют взаимодействие между ПГК и окружающими клетками, обеспечивая их правильное позиционирование и развитие. Важным аспектом является синтез и взаимодействие факторов транскрипции, которые задают программные механизмы дифференцировки. Например, транскрипционные факторы, такие как OCT4, SOX2 и NANOG, оказывают непосредственное влияние на судьбу клеток, задавая их потенциал к становлению половых клеток или соматических клеток.
Реализацию этих процессов поддерживают сигнальные пути, обеспечивающие передачу информации внутри клеток и между ними. Среди них notable роли играют пути WNT, BMP и Notch, регулирующие дифференцировку и концентрацию факторов, стимулирующих дифференцирование или удержание во pluripotентном состоянии. Курсы действий этих путей выбираются в зависимости от микроокружения ПГК и уровней внешних сигналов.
Генетические факторы в сочетании с клеточной микросредой создают условия для стабилизации положения ПГК и их перехода к стадии дифференцировки. Важным механизмом является взаимодействие с окружающей матрицей, которая регулирует миграцию и фиксирует клетки в заданных зонах. Эти механизмы обеспечивают четкое расположение клеток в гонах, а также их участие в процессе формирования половых линий и последующего развития половых органов.
Значением имеют также процессы эпигенетической регуляции, меняющие активность генов, связанных с дифференцировкой, и обеспечивающие точечное управление развитием ПГК. Ключевым моментом тут становится модификация ДНК и гистонов, а также регулирующие факторы, обеспечивающие переключение между состояниями «стволовой» и дифференцированной клетки.
Влияние генетических сигналов на развитие предшественников
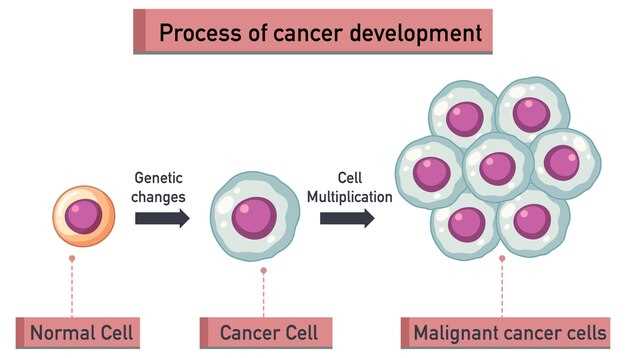
Регуляция развития предшественников половых клеток начинается с активных генетических сигналов, управляемых специфическими факторами транскрипции и сигнальными путями. Изучение их ролей помогает понять, как происходит дифференцировка и формирование клеточных линий, ведущих к половой зрелости.
Одним из ключевых элементов является гетерогенный ядерный фактор (HNF) и его влияние на экспрессию генов, ответственных за гаметогенез. Взаимодействие с сигнальными путями, включая BMP, WNT и Notch, регулирует переход предшественников в дальнейшие стадии развития. Эти пути активируют или подавляют определённые гены, меняя судьбу клеток по мере их дифференцировки.
| Ключевые гены и сигнальные пути | Роль в развитии предшественников |
|---|---|
| PRDM14, BLIMP1 | Обеспечивают и поддерживают статусы инициации гаметогенеза, подавляя ненужные дифференцирующие программы |
| BMP-сигнальный путь | Играет роль в определении полового направления и стимулирует развитие поддерживающих клеток, взаимодействуя с SMAD-факторами |
| WNT-зависимый путь | Обеспечивает баланс между пролиферацией и дифференцировкой, регулируя экспрессию генных регуляторов |
| Notch | Контролирует клеточную судьбу через каскады транскрипционных факторов, способствуя развитию поддерживающих элементов предшественников |
Поддержание правильной активности генных регуляторов – залог успешного формирования половых клеток. Воздействие извне или мутации в генах, кодирующих компоненты сигнальных путей, могут привести к сбоям в развитии, а это, в свою очередь, влияет на фертильность и гаметогенез. Поэтому понимание генетических сигналов поможет не только распознать причины отклонений, но и разработать методы коррекции.
Особенности развития и дифференцировки предшественников половых клеток в различных тканях
Образуяся в различных участках организма, предшественники половых клеток подвергаются специфическим механизам дифференцировки. В гонадной ткани они подвергаются активации под воздействием локальных факторов, таких как экспрессия генных программ, регулируемых репликативными и сигнальными путями.
В течение развития в яичниках предшественники гамет проходят стадию праполовых клеток, а затем – строковую дифференцировку в овоциты или фолликулярные клетки. Внутри яичника активируется генной регулятор, определяющий направление дифференцировки, что ведет к завершению формирования первичных половых клеток на ранних этапах развития.
В мужских тканях предшественники сперматогенного эпителия, называемые сперматогониями, активируются за счет локальных факторов роста и гормональных сигналов, таких как тестостерон. Их развитие включает деление с сохранением плюрипотентных характеристик, что способствует дальнейшему формированию сперматоцитов и, в конечном итоге, зрелых сперматозоидов.
Вне гонадных структур, например, в межшейковых тканях или мезенхиме, предшественники половых клеток остаются в состоянии до дифференцировки или перехода к гонадным зонам. Там они подвергаются воздействию специфических факторов, таких как митогенные белки и сигнальные каскады, активирующие путь дифференцировки.
На каждом этапе в тканях осуществляется строгий контроль за экспрессией генов, участвующих в признаках половой идентичности и созревания. Различия в локальных сигнальных путях и гормональных воздействиях обеспечивают характерные особенности развития предшественников в разных тканях, что и определяет их дальнейший путь и функциональные возможности.
Преобразование предшественников в половые клетки в яичниках и яичках
Начинается процесс дифференцировки предшественников половых клеток в яичниках и яичках с их деления и миграции. В яичниках зародышевые клетки, называемые овоцитами на этапе сборки яичника, проходят мейотический цикл в специальных образованиях – фолликулах. В яичках предшественники, называемые спермогониями, делятся митозом, увеличиваясь и переходя к мейозу, что способствует образованию зрелых сперматозоидов.
Ключевое значение имеет механизм регуляции деления и дифференцировки, основанный на взаимодействии генов и гормональных сигналов. В яичниках деятельность гонадотропных гормонов стимулирует рост фолликулов, что обеспечивает развитие и созревание овоцитов. В яичках Лейдиги вырабатывают тестостерон, стимулируя сперматогенез, а поддерживающие клетки Сертоли обеспечивают питание и поддержку делящихся клеток.
Процесс мейоза у предшественников протекает в несколько стадий, включающих редукционное деление, что обеспечивает создание гамет с половинным набором хромосом. В яичниках овоциты остаются в профазе мейоза до овуляции, тогда как у мужских предшественников мейоз завершается быстрее, образуя зрелые сперматозоиды.
Значимым этапом является формирование первичных половых признаков и завершение стадии созревания предшественников. У женщин это происходит примерно в период полового созревания, а у мужчин – в течение нескольких месяцев после полового созревания и продолжается всю жизнь. В результате развитие предшественников превращается в полноценных гамет, готовых к участию в оплодотворении.
Методы определения стадий развития предшественников у эмбрионов
Используйте иммуногистохимию для выявления маркеров, специфичных для определенных этапов дифференцировки предшественников половых клеток. Этот метод позволяет точно определить экспрессию белков, характерных для клеток на разных стадиях развития.
Микроскопия с использованием флуоресцентных красок дает возможность визуализировать паттерны экспрессии маркеров внутри тканей, что помогает определить уровни дифференцировки. Применяйте её совместно с иммуногистохимией для повышения точности определения стадий.
Проведение полимеразной цепной реакции (ПЦР) позволяет количественно оценить уровни экспрессии генов, связанных с развитием предшественников. Этот метод особенно полезен при сравнении различных стадий внутри одной эмбриональной выборки.
Визуализация с помощью электронного микроскопа предоставляет подробные изображения структурных изменений в клетках, характерных для определенных этапов развития. Используйте его для подтверждения стадий, выявленных другими методами.
Классификация стадий также основывается на морфологических критериях, таких как форма ядер, организация цитоплазмы и расположение в тканях. Фиксация и окраска тканей под микроскопом позволяют отметит эти признаки и обеспечить их дифференцировку по этапам.
Комбинирование методов–иммуно- и гистохимии, молекулярных анализов и морфологических критериев–повышает точность определения стадии развития предшественников. Такой подход помогает комплексно охарактеризовать эмбриональные этапы и отслеживать динамику изменений.
Клиническое значение ошибок развития предшественников
Диагностика врождённых аномалий обусловлена точным определением стадий развития предшественников половых клеток. Например, нарушения в процессе миграции или дифференцировки прегаметных клеток могут привести к образованию гонадных или внегонадных аномалий, что влияет на репродуктивную функцию и здоровье в зрелом возрасте.
Обнаружение ошибок в формировании пренатальных структур способствует ранней профилактике и планированию методов коррекции. Например, выявление гибридных или двойных структур в мошонке или яичнике помогает избежать поздних операций и снизить риск развития рака или других осложнений.
Помимо диагностики, понимание регистрируемых ошибок позволяет улучшить подбор терапевтических стратегий. При наличии гипоплазии зародышевых структур назначают стимуляцию развития, а при врождённых гипертрофиях – своевременное хирургическое вмешательство и коррекция гормонального баланса.
Это знание важно для профилактики наследственных заболеваний, связанных с аномалиями развития предшественников. Генетический контроль и диагностика предрасположенности позволяют снизить вероятность появления пороков развития на более поздних этапах жизни.
- Нарушение д?рыс миграции обеспечивает развитие внегенитальных аномалий, таких как крипторхизм или кольпогений
- Некорректная дифференцировка может привести к гипоплазии или гипертрофии гонад, что сказывается на гормональной функции и фертильности
- Ошибки на ранних этапах развития предшественников могут служить предвестниками злокачественных процессов, требующих своевременного вмешательства
Контроль за ошибками в развитии предшественников помогает не только в лечении конкретных заболеваний, но и в профилактических мероприятиях, ориентированных на сохранение репродуктивного здоровья и общего состояния организма.