Фосфорилирование белков – широко распространённый механизм регуляции активности клеточных компонентов. Этот процесс заключается в добавлении фосфатной группы к аминокислотным остаткам белка, что может значительно менять его функционирование.
Когда белки подвергаются фосфорилированию, меняется их структурное состояние и способность взаимодействовать с другими молекулами. В результате активируются или подавляются конкретные ферменты, сигнальные пути или структурные компоненты клетки. Быстрые изменения активности белков через фосфорилирование обеспечивают своевременное реагирование на внешние и внутренние сигналы.
На клеточном уровне фосфорилирование играет ключевую роль в управлении делением, дифференцировкой и метаболизмом. В теплообменных цепях, например, оно регулирует работу митохондрий, а в процессе передачи сигналов внутри клетки – обеспечивает передачу информации с поверхности к ядру. Каждый из этих механизмов зависит от точно настроенного баланса процессов добавления и удаления фосфатных групп.
Механизм фосфорилирования: как происходит добавление фосфатных групп и его роль в регуляции белков
Фосфорилирование белков происходит с помощью ферментов-киназ, которые катализируют перенос фосфатной группы с молекулы АТФ на определенные аминокислоты белка, преимущественно на тирозин, серин или треонин. Этот процесс начинается с распознавания киназой специфических участков белка, что обеспечивает точечную регуляцию функции последнего. После связывания киназы с целевым белком происходит активация каталитического центра фермента, что позволяет перенести фосфатную группу.
Добавление фосфатных групп изменяет структуру белка, вызывая конформационные сдвиги. Эти изменения могут активировать или инактивировать белковые функции, либо регулировать их связывание с другими молекулами. Важным аспектом является обратимый характер процесса: фосфорилирование может быть отменено с помощью фосфатаз – ферментов, удаляющих фосфатные группы. Такой динамический цикл обеспечивает быструю и точную регуляцию активности белка.
Сам механизм фосфорилирования включает присоединение фосфатной группы к гидроксильной группе соответствующей аминокислоты. В результате формируется фосфоэфирная связь, которая стабилизирует новые конформационные состояния белка и влияет на его взаимодействия с другими молекулами. Этот процесс часто запускает или блокирует протеиновые сигнальные пути, контролируя важные клеточные явления, такие как рост, деление, дифференцировка или апоптоз.
Совмещение активности киназ и фосфатаз создает тонкую балансировку уровня активности регуляторных белков, что позволяет клетке быстро реагировать на внутренние и внешние сигналы. В результате, фосфорилирование становится неотъемлемой частью клеточной коммуникации, обеспечивая гибкость и точность регуляции сложных процессов жизнедеятельности.
Ключевые ферменты: киназы и фосфатазы – кто что делает
Чтобы эффективно управлять процессами фосфорилирования белков, необходимо четко знать функции киназ и фосфатаз. Киназы инициируют передачу фосфата на аминокислоты белков, активируя или деактивируя их. Они работают практически как ключи к состоянию активности клеточных белков, регулируя сигнальные пути, обмен веществ и деление клеток.
Основные киназы можно разделить на группы по их действию и целевым белкам:
- Киназы, добавляющие фосфат к серину и треонину – например, протеинкиназа А (PKA), протеинкиназа В (PKB или Akt), а также киназы семиозина.
- Киназы, действующие на тирозин – например, рецепторные тирозинкиназы (EGFR, VEGFR), цитозольные тирозинкиназы (Src).
- Киназы, специфичные к другим остаткам, например, ламинарные киназы или киназы, участвуют в регуляции клеточного цикла (например, циклин-зависимые киназы, CDKs).
Киназы выполняют функцию передачи сигнала, присоединяя фосфатную группу к определенной аминокислоте, что вызывает конформационные изменения и изменение активности белка. Они работают цепочками: один фермент активирует другой, создавая сложные цепи сигналов, регулируя развитие реакции и ее интенсивность.
Фосфатазы же противоположны по действию. Они удаляют фосфатную группу, возвращая белки к исходному состоянию. Это обеспечивает баланс и контроль над процессами фосфорилирования, предотвращая гиперактивность сигналов и обеспечивая точную настройку клеточной активности.
Наиболее известные представители фосфатаз – сериново-адаминовая фосфатаза (PP1), кальциевой-мускуловой фосфатаза (calcineurin) и легкие тирозинфосфатазы. Быстрое удаление фосфата дает возможность клетке быстро реагировать на изменения, отключая сигнальные пути или возвращая белки к исходному состоянию.
Эффективное взаимодействие киназ и фосфатаз обеспечивает динамическую регуляцию белковых функций, которая критична для нормальной работы клетки. Важно следить за балансом между их активностью, чтобы поддерживать здоровье клетки и контролировать процессы, связанные с развитием болезней, таких как рак или воспаление.
Фосфорилирование и изменение конформации белка
Фосфорилирование белка вызывает структурные изменения, которые регулируют его активность и взаимодействия с другими молекулами. Добавление фосфатной группы к определенным аминокислотам, например, к серину, треонину или тирозину, вызывает изменение электростатического баланса внутри белка. Это изменение приводит к деформации его конформации, открывая или перекрывая активные сайты.
Изменение формы белка под влиянием фосфорилирования регулирует его функцию, активируя или деактивируя его участие в клеточных процессах. Например, в случае ферментов фосфорилирование может привести к появлению новых участков взаимодействия, что усиливает их связь с субстратами или другими молекулами. В других случаях конформация меняется таким образом, что белок становится неспособен взаимодействовать с целями, подавляя его активность.
Важно учитывать, что структура белка влияет не только на его активность, но и на его способность перемещаться по клетке. Процесс фосфорилирования часто служит триггером для миграции белка к определенным мембранам или в ядро, где он участвует в регуляции генов или сигнальных каскадов.
Приведем пример: при активации пути передачи сигнала, белки-мишени получают фосфатные группы, вызывающие их смену конфигурации. Это открывает им доступ к новым сайтам взаимодействия, что запускает дальнейшие цепочки клеточных реакций.
| Механизм действия фосфорилирования | Результат изменения конформации |
|---|---|
| Присоединение фосфатной группы к аминокислоте | Обеспечивает структурный сдвиг, активирует или блокирует активные сайты |
| Изменение электростатического баланса | Расслабление или затягивание структурных элементов |
| Взаимодействие с другими белками | Образование новых интерфейсов для связывания |
Повреждение или нарушение механизма фосфорилирования способно привести к неправильной конформации белков, что может стать причиной аномальных клеточных процессов, в том числе заболеваний. Поэтому контроль за этим механизмом важен для поддержания обмена веществ и регуляции клеточной деятельности.
Стоп-критерии для активации или деактивации белков
Обратный процесс – деградация фосфорилизованных белков с помощью фосфатаз – напрямую зависит от наличия доступных ферментов и их активности. Когда уровень фосфатаз достигает определенного равновесия с киназами, происходит дезактивация белка. Такие критерии часто связаны с балансом внутри клетки между активностью и снижением активности, что контролирует процесс через изменение концентрации активных форм белка.
Также, пороги для активации связаны с концентрацией и доступностью лиганда, если белок функционирует как рецептор. В таких случаях, активация происходит, когда концентрация лиганда превышает определенное значение, вызывая конформационные изменения и последующее фосфорилирование.
Ключевое значение имеют сроки взаимодействия и продолжительность фосфорилирования – наличие определенных временных рамок служит критерием для сдвига белка в активное или неактивное состояние. Например, кратковременное фосфорилирование приводит к временной активации, в то время как долговременное может инициировать более устойчивые изменения.
Наконец, наличие или отсутствие определенных посттрансляционных меток после фосфорилирования, таких как убикинование или метилирование, служат стоп-критериями, сигнализируя о необходимости изменения активности или деградации белка. Эта система обеспечивает точное регулирование клеточных процессов и исключает случайные переключения между состояниями.
Роль фосфатов в межмолекулярных взаимодействиях
Фосфаты участвуют в стабилизации межмолекулярных связей за счет формирования водородных связей и электростатических взаимодействий с другими молекулами, особенно через заряженные группы. Распределение зарядов на атомах фосфата способствует притяжению к положительно заряженным участкам поверхности белков, нуклеотидов и мембранных компонентов.
При присоединении к белкам фосфаты изменяют их электростатические свойства, повышая аффинитет к другим молекулам и активируя или блокируя функциональные домены. Это влияет на сборку белковых комплексов и динамику клеточных субъединиц, создавая возможность быстрого реагирования на сигнальные сигналы и изменение окружающей среды.
Фосфатные группы часто служат связующим звеном для образования комплексных структур, таких как нуклеопротеины и мембранные белки. В лиганд-репchenkных взаимодействиях именно фосфаты обеспечивают высокую специфицность и силу связывания, что критично для эффективности передачи сигнала или транспорте веществ через клеточную мембрану.
Деятельность ферментов, регулирующих фосфорилирование и дефосфорилирование, напрямую зависит от взаимодействия с фосфатами. Эти процессы регулируют конформационные изменения белков, что, в свою очередь, управляет их способностью взаимодействовать с другими макромолекулами и формировать правильные структурные комплексы.
Количество и расположение фосфатных групп на молекулах определяет их способность к межмолекулярным связям, а также влияет на их роль в формировании функциональных микросред, таких как сигнальные пути и механизмы регуляции метаболизма. В итоге, фосфаты служат не только как соединительные элементы внутри молекул, но и как важные посредники в создании сложных межмолекулярных сетей.
Методы определения фосфорилированных белков в лабораторных условиях
Для выявления фосфорилированных белков используют методом иммуноблоттинга (вастринг-иммунофлуоресценции). Вначале проводят электрофорез белков по SDS-PAGE, затем переносят их на мембрану и инкубируют с антителами, специфическими к фосфатной группе, например, к фосфо-ТОР или фосфо-ТАЙР. Этот метод позволяет не только обнаружить, но и количественно оценить уровень фосфорилирования.
Масс-спектрометрия является мощным инструментом для точного определения мест фосфорилирования и состава фосфорилированных пептидов. После гидролиза белков выделяют фосфорилированные пептиды с помощью хроматографических методов и анализируют их при помощи масс-спектрометра, что обеспечивает высокую разрешающую способность.
Метод радиолабelling основывается на использовании радионуклидов фосфора. В белковых образцах вводят радиоактивный фосфор-32 или фосфор-33, после чего фиксируют фосфорилированные белки с помощью гель-электрофореза и авторежистрии. Этот подход позволяет количественно определить уровень фосфорилирования с высокой чувствительностью.
| Метод | Описание | Преимущества |
|---|---|---|
| Иммуноблоттинг | Использует специфичные антитела к фосфатной группе, выявляя фосфорилированные белки на мембране | Высокая чувствительность, возможность количественной оценки |
| Масс-спектрометрия | Анализирует фосфорилированные пептиды для определения точных мест модификации | Высокая точность, выявляет специфичные места фосфорилирования |
| Радиолабеллирование | Использует радиоактивный фосфор для маркировки белков | Чувствительность, количественный анализ |
Практические аспекты влияния фосфорилирования на процессы жизнедеятельности клетки
Контролируйте активность ферментов, регулируемых фосфорилированием, чтобы модулировать метаболические пути. Например, изменение уровня киноз или фосфатаз позволяет управлять гликолизом или гликогенолизом, что важно для поддержания энергетического баланса.
Используйте ингибиторы или активаторы ферментов, специфичных для определённых фосфорилированных участков, чтобы регулировать пролиферацию клеток или апоптоз. Это особенно актуально при разработке целевых терапий или исследований опухолевых процессов.
Проводите эксперименты с моделями, в которых изменяют фосфорилирование ключевых белков, чтобы понять их роль в конкретных клеточных функциях. Например, мутации в сайтах фосфорилирования позволяют определить влияние на клеточный цикл или сигнализацию.
Следите за скоростью и характером фосфорилирования во время реакции на внешние раздражители или стрессовые ситуации. Это поможет понять, как клетки адаптируются, активируя или подавляя определённые пути, что важно для разработки стрессоустойчивых клеточных линий.
Применяйте методы анализа, такие как масс-спектрометрия или иммуноблоттинг, чтобы точно определить уровень фосфорилирования в белках. Это даст возможность количественно оценить изменения и связать их с функциональными результатами.
Внедряйте системы мониторинга, которые позволяют наблюдать динамику фосфорилирования в реальном времени. Такие подходы помогают выявлять быстрые реакции клетки и открывают новые механизмы регуляции на молекулярном уровне.
Регуляция клеточного цикла и деления клеток
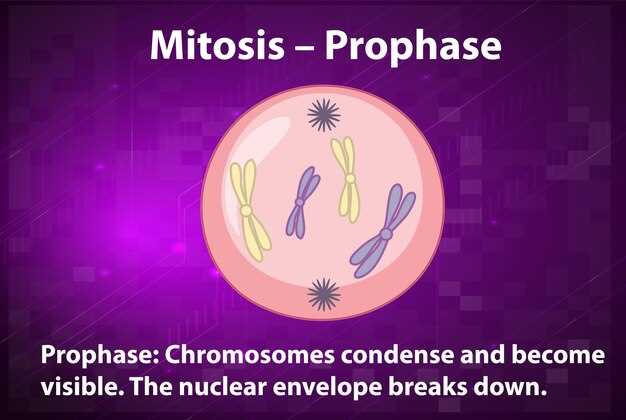
Фосфорилирование белков управляет основными этапами клеточного цикла, регулируя активность циклин-зависимых киназ (КЗК). Эти ферменты активируются путем добавления фосфатных групп, что позволяет им связываться с своими субстратами и запускать переходы между фазы.
Особое значение имеет циклин-зависимая киназа 1 (ЦИК-1), которая регулирует переход G1 в S-фазу. Фосфорилирование актинов и других регуляторных белков освещает сигнал о начале репликации ДНК. Аналогично, ЦИК-2 активируется в G2 и ведет к подготовке клетки к митозу.
Механизм фосфорилирования включает участие циклинов, которые связываются с киназами и стабилизируют их активность. После выполнения функции, фосфатные группы удаляются фосфатазами, что выключает активность КЗК и обеспечивает точное завершение каждого этапа.
Ключевым моментом становится контроль за ингибиторами КЗК, такими как p21 и p27, которые связываются с активными комплексами и препятствуют их действиям при необходимости остановки деления. Эти ингибиторы регулируют процесс в ответ на стрессовые сигналы или повреждение ДНК.
Процесс фосфорилирования также регулирует возможность клетки переходить в состояние покоя – G0. Здесь активность КЗК снижается, и клетка сосредотачивается на выполнении функций, а не на делении. Таким образом, система фосфорилирования создает динамичный баланс между ростом, подготовкой к делению и остановкой процесса.
Контроль за этим процессом осуществляется точной калибровкой активности ферментов и их взаимодействием с регуляторными белками, что обеспечивает согласованность и точность клеточного деления в рамках целостности организма.
Роль в передаче сигнала и адаптации к внешним условиям
Фосфорилирование белков служит ключевым механизмом быстрого реагирования клетки на изменение условий окружающей среды. Оно активирует или подавляет функции белков, модифицированных в ответ на определенные сигнальные стимулы, такие как внешние раздражители или внутренние метаболические изменения. Этот процесс запускает каскад реакций, укрепляя связь между восприятием сигнала и его конкретной реализацией внутри клетки.
Например, при стрессовых условиях фосфорилирование активирует белки, участвующие в ускоренной репликации ДНК или мобилизации запасных веществ, что обеспечивает выживание клетки. В условиях недостатка питательных веществ оно регулирует минеральный обмен и энергетический баланс, позволяя клетке экономить ресурсы. Такой механизм автоматической коррекции помогает поддерживать гомеостаз и адаптироваться к непредсказуемым воздействиям.
Кроме того, фосфорилирование белков участвует в регуляции рецепторных систем, позволяя клеткам точно воспринимать и усиливать сигналы из внешней среды. Внутривещества активируют сигнальные пути, после чего с помощью фосфорилирования белков происходит трансформация этого сигнала в этически оправданный клеточный ответ – изменение активности ферментов, перестройка цитоскелета, изменения в экспрессии генов. Это обеспечивает быстрое и целенаправленное реагирование на внешние вызовы.
Динамичность этого процесса позволяет клеткам не только отвечать на текущие условия, но и предвидеть возможные изменения, корректируя свои действия и стратегии. Такой механизм обеспечивает не только адаптацию, но и развитие устойчивости к повторяющимся воздействиям, стимулируя формирование новых метаболических путей и регуляторных связей.
Влияние на метаболические пути и энергетический обмен
Фосфорилирование белков регулирует ключевые ферментативные реакции в метаболических путях, обеспечивая адаптацию клеточного энергетического обмена к текущим потребностям. Активное добавление фосфатных групп к ферментам участвует в ускорении или замедлении их активности, что напрямую влияет на баланс гликолиза, гликогенолиза и жирового обмена.
Модификация ферментов гликолиза, таких как пируваткиназа и фосфофруктокиназа, регулируется посредством фосфорилирования, что регулирует скорость превращения глюкозы в пируват и образует основы для получения АТФ. В контексте аэробного метаболизма фосфорилирование митохондриальных ферментов стимулирует окислительный фосфорилирование, увеличивая производство энергии при необходимости усиленных клеточных процессов.
Фосфорилирование также влияет на обмен жирных кислот, активируя или подавляя ключевые ферменты бета-окисления. Например, оно регулирует функцию карнитин-переносных ферментов, что координирует транспорт жирных кислот в митохондрии и способствует их разложению для получения энергии.
Этот механизм служит механизмом быстрой адаптации клеточного метаболизма. Он позволяет клеткам переключаться между запасанием и мобилизацией энергии, в зависимости от уровня сигнала или метаболического стресса. Постоянное фосфорилирование и дефосфорилирование создают динамическую систему, которая поддерживает баланс между анаболическими и катаболическими процессами.
Понимание этой регуляции помогает разработать стратегии для улучшения обмена веществ у пациентов с метаболическими нарушениями, а также позволяет выявлять новые цели для фармакологических вмешательств, направленных на контроль энергетического уровня и метаболической активности.
Связь между дисфункциями фосфорилирования и развитием заболеваний
Нарушение регуляции фосфорилирования белков может привести к неправильной передаче сигналов внутри клетки, что уже связывают с развитием рака, нейродегенеративных и сердечно-сосудистых заболеваний.
Недостаточная активность соответствующих киназ или гиперактивность фосфатаз вызывает снижение или чрезмерную активность целевых белков, что меняет баланс клеточных процессов и стимулирует патологические состояния.
Например, дисфункция белковых киназ, участвующих в контроле роста клеток, связывают с развитием рака, поскольку это способствует неконтролируемой делящейся активности клеток и образованию опухолей.
У пациентов с нейродегенеративными болезнями обнаруживают неправильную фосфорилирование белков, что ведет к образованию агрегатов, способных нарушать функции нейронов и вести к их гибели.
Превышение или недостаток фосфорилирования в сердце влияет на работу миокарда, усугубляя сердечную недостаточность или приводя к аритмиям.
Поэтому диагностика и регулировка дисфункций в системах фосфорилирования могут стать мощным инструментом при лечении соответствующих заболеваний и предотвращении их прогрессирования.